론고 · 고금의고 041
보이지 않는 단백질을 어떻게 보았는가 — 켄드루와 미오글로빈
질병을 발견하고, 만들고, 치료하는 사람들 · 세 번째 글
미오글로빈 구조 규명의 성취는 측정 신호와 원하는 분자 배치 사이에 추가 실험·계산·화학적 해석을 연결한 데 있으며, 각 단계의 구별이 그 모형을 신뢰할 이유를 설명한다.
단백질 구조 그림을 처음 보면 복잡하게 접힌 리본이 눈에 들어온다. 빨강과 파랑으로 칠한 줄기 사이에 작은 분자가 끼어 있고, 화면을 돌리면 감추어졌던 공간이 나타난다. 너무 또렷해서 현미경으로 찍은 대상을 색칠한 것처럼 느껴진다. 그러나 이 그림의 바탕에는 사진과는 다른 종류의 관찰이 있다.
1958년 존 켄드루와 동료들이 발표한 미오글로빈의 삼차원 모형도 이 차이에서 출발한다. 논문의 제목은 X선 분석으로 얻은 삼차원 모형이라고 말한다. 대상에서 나온 신호를 측정하고, 그 신호를 공간의 분포로 되돌리고, 그 안에서 분자가 어떻게 접혔는지를 읽었다. 단백질의 구조를 보았다는 성취는 이 여러 작업을 하나로 연결한 데 있었다.1
그렇다면 단백질 구조는 관찰된 사실인가, 계산된 모형인가. 양자택일로 답하면 과학의 실제 작업을 놓친다. 계산이 관찰의 빈틈을 아무렇게나 메운 것도 아니고, 측정이 스스로 원자의 이름을 말해 준 것도 아니다. 무엇을 직접 측정했고 어떤 추가 정보로 해석을 제한했는지 따라가면, 모형이라는 말은 오히려 구조 지식의 단단함을 설명하는 말이 된다.
먼저 풀 수 있는 단백질을 고른다
미오글로빈은 근육세포에서 산소를 일시적으로 저장하는 단백질이다. 혈액에서 산소를 운반하는 헤모글로빈과 관계가 있지만, 여러 사슬로 이루어진 헤모글로빈보다 작고 단순한 출발점이었다. MRC 연구소의 역사 기록은 페루츠의 헤모글로빈 연구와 켄드루의 미오글로빈 연구가 같은 연구 조직 안에서 진행된 과정을 설명한다.5
여기서 연구 대상을 고르는 문제는 중요하다. 생물학적으로 가장 궁금한 분자가 반드시 그때의 기술로 가장 잘 풀리는 분자는 아니다. 켄드루는 노벨 강연에서 충분한 양을 얻을 수 있고, 결정이 잘 생기며, 비교적 작은 단백질을 찾았다고 설명했다. 여러 생물종을 살핀 끝에 향유고래 미오글로빈을 선택했다는 회고다.3
분자에서 곧바로 사진 한 장을 얻을 수 있다면 재료 선택은 부차적인 일처럼 보인다. 그러나 결정을 만들고 여러 조건에서도 그 질서를 유지해야 한다면, 재료의 성질은 실험의 가능성을 결정한다. 어떤 대상이 먼저 과학의 표준이 되는지는 중요성의 순위와 실험하기 좋은 정도가 함께 정한다.
이것은 이후의 병리모델과 제약산업 이야기로도 이어질 질문이다. 연구하기 쉬운 대상을 통해 일반 원리를 얻을 수 있다. 동시에 그 대상으로 잘 답할 수 있는 질문이 연구의 중심을 차지하기도 한다. 미오글로빈의 성공을 읽을 때는 선택의 제약과 그 제약 안에서 이루어진 성취를 함께 보아야 한다.
회절점에는 분자의 윤곽이 그려져 있지 않다
X선 결정학에서 기록하는 것은 결정에 X선을 비추었을 때 생기는 회절 신호다. 결정 안에서 반복 배열된 분자들의 전자가 X선을 산란시키고, 산란파들이 간섭한 결과가 점들의 세기 분포로 나타난다. 단백질 한 개의 외곽선을 카메라에 맺는 방식과는 다르다.
전자밀도를 복원하려면 파동의 진폭과 상대적 위상이 필요하다. 보통의 회절 강도 측정에서는 진폭에 관한 정보를 얻을 수 있지만 위상은 함께 얻지 못한다. 같은 크기의 파동도 봉우리와 골짜기가 어떻게 어긋나느냐에 따라 합쳐진 모양이 달라진다. 구조를 되찾는 데 이 어긋남의 정보가 필요한 것이 위상 문제다.4
1958년 논문은 이를 풀기 위해 중원자를 붙인 여러 유도체의 회절을 비교하는 동형치환법을 사용했다. 원래 결정의 질서를 충분히 유지하면서 산란에 변화를 주면, 그 차이에서 위상을 추정할 단서를 얻을 수 있다. 단백질을 보기 위해 다른 원자를 끌어들인 셈이다. 중원자를 붙였다는 사실보다 붙인 뒤에도 비교 가능한 결정이어야 한다는 조건이 핵심이다.1
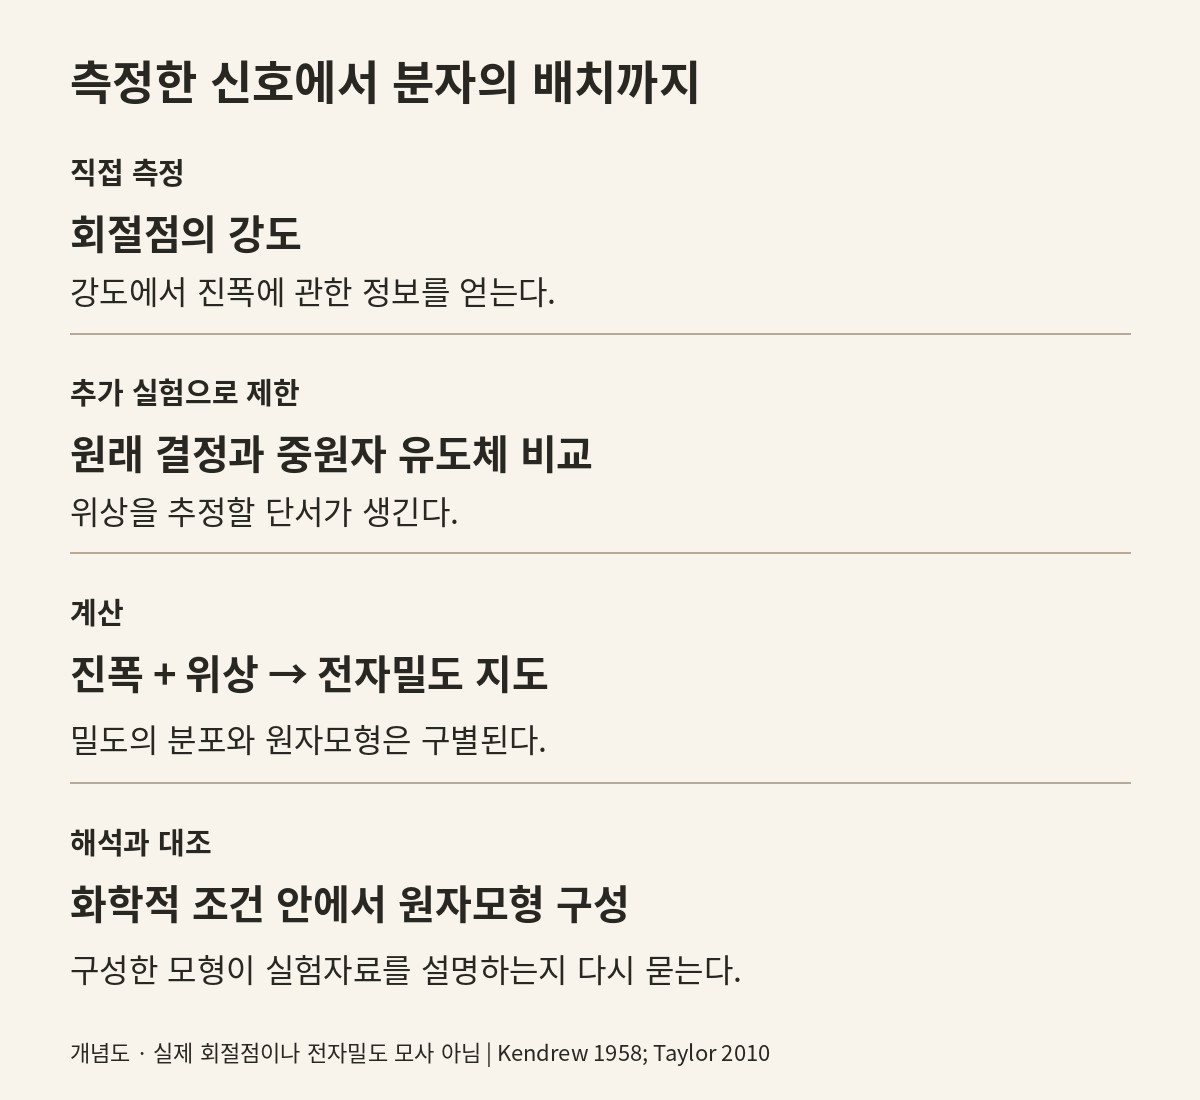
그림 1. 직접 측정한 신호, 위상을 얻는 추가 실험, 전자밀도의 계산, 원자모형의 해석을 구분한 자체 도식. 실제 회절점이나 전자밀도 데이터를 모사한 그림이 아니다.41
여기서 계산은 관찰과 경쟁하지 않는다. 눈으로 해석할 수 없는 종류의 관찰을 다른 표현으로 바꾸는 역할을 한다. 다만 계산에 넣은 가정과 실험의 조건을 함께 알아야 한다. 결정이 심하게 바뀌었는데도 같은 결정처럼 취급하거나, 불확실한 위상을 정확한 값처럼 다루면 그 뒤에 나오는 그림의 선명함만으로 오류를 알아채기 어렵다.
독자가 단백질 그림에서 확인해야 할 것도 이 연결이다. 색채가 정교한지보다 어떤 실험에서 얻은 모형인지, 어느 정도의 세부까지 구별할 수 있었는지, 표시한 부분 중 무엇이 실제 자료로 지지되는지가 중요하다. 같은 리본 그림으로 출력해도 그 밑의 정보량은 서로 다를 수 있다.
6Å에서 보이는 것과 2Å에서 보이는 것
처음부터 모든 원자를 알아낸 것은 아니었다. 1958년 발표는 낮은 분해능에서 단백질의 삼차원 배치를 읽어 낸 성과였다. 켄드루의 회고에 따르면 6Å 단계는 1957년에, 2Å 단계는 1959년에 이루어졌다. 논문 발표는 각각 1958년과 1960년이므로 작업이 이루어진 해와 공개된 해를 나누어 읽어야 한다.32
Å은 옹스트롬으로 읽으며 1Å은 0.1nm다. 따라서 6Å=0.6nm, 2Å=0.2nm다. 분해능 수치가 작아질수록 더 미세한 공간 정보를 다룬다. 6을 2로 나누면 길이 척도에서는 세 배의 차이지만, 이를 모든 좌표가 세 배 정확해졌다는 말로 바꾸어서는 안 된다. 분해능은 자료가 담는 공간적 세부의 수준이고, 특정 원자의 위치가 얼마나 확실한지는 별도의 문제다.
6Å 단계에서는 길게 이어진 밀도의 덩어리와 전체적인 접힘의 배치를 살필 수 있었다. 2Å 단계로 들어가면 그 덩어리 안의 나선 구조와 곁사슬, 헴 주변의 배치를 더 구체적으로 해석할 수 있게 된다. 켄드루의 강연은 낮은 분해능의 막대 같은 영역이 더 높은 분해능에서 어떻게 달리 보였는지를 실제 지도와 함께 설명한다.3
그러므로 첫 구조라는 표현에는 층위가 있다. 전체 모양을 처음 복원한 것과 세부 원자 배치를 해석할 수 있게 된 것은 연결된 성취지만 같은 순간은 아니다. 1958년을 인정하기 위해 1960년을 지울 필요도 없고, 원자 수준의 후속 성과를 강조하기 위해 최초 지도를 미완성의 실패로 취급할 이유도 없다.
지도를 계산하는 컴퓨터와 지도를 읽는 사람
전자밀도를 계산하는 일은 파동 성분을 많이 더하는 작업이다. 정보가 늘수록 합산해야 할 항도 늘어난다. 컴퓨터는 이미 눈으로 보인 구조를 예쁘게 그리는 마지막 장치가 아니라, 해석할 지도를 얻는 과정 자체에 들어와 있었다.
켄드루는 2Å 단계의 푸리에 합성에 EDSAC II를 사용했고, 그 합성 계산 자체에 약 12시간이 걸렸다고 기록했다. 이는 앞선 데이터 수집과 준비 계산을 제외한 시간이다. 초기 연구에서 EDSAC I을 사용한 일도 회고한다. 이때의 컴퓨터가 분자의 접힘을 스스로 제안한 것은 아니다. 실험으로 제한한 진폭과 위상 정보를 합산해 공간의 분포를 계산했다.3
그 다음에는 밀도 속에 무엇을 놓을지 판단하는 작업이 남는다. 단백질 사슬이 이어져야 한다는 조건, 이미 알려진 화학 결합의 성질, 서열과 입체화학은 해석을 제한한다. 지도와 모형을 구별하면 이 판단은 주관의 침입이 아니라 검토해야 할 과학적 작업으로 보인다. 어떤 위치에 원자를 놓으면 그 모형이 실험자료를 설명하는지 다시 물을 수 있기 때문이다.
이 점에서 처음의 질문으로 돌아갈 수 있다. 단백질 구조는 계산했으므로 믿기 어려운 것이 아니다. 계산에 들어간 정보와 결과를 시험하는 관계가 공개되어 있어야 믿을 이유를 설명할 수 있다. 보기 좋은 그림과 추적 가능한 모형을 구별하는 기준도 그 관계에 있다.
지금 돌려 보는 모형은 언제 만들어진 것인가
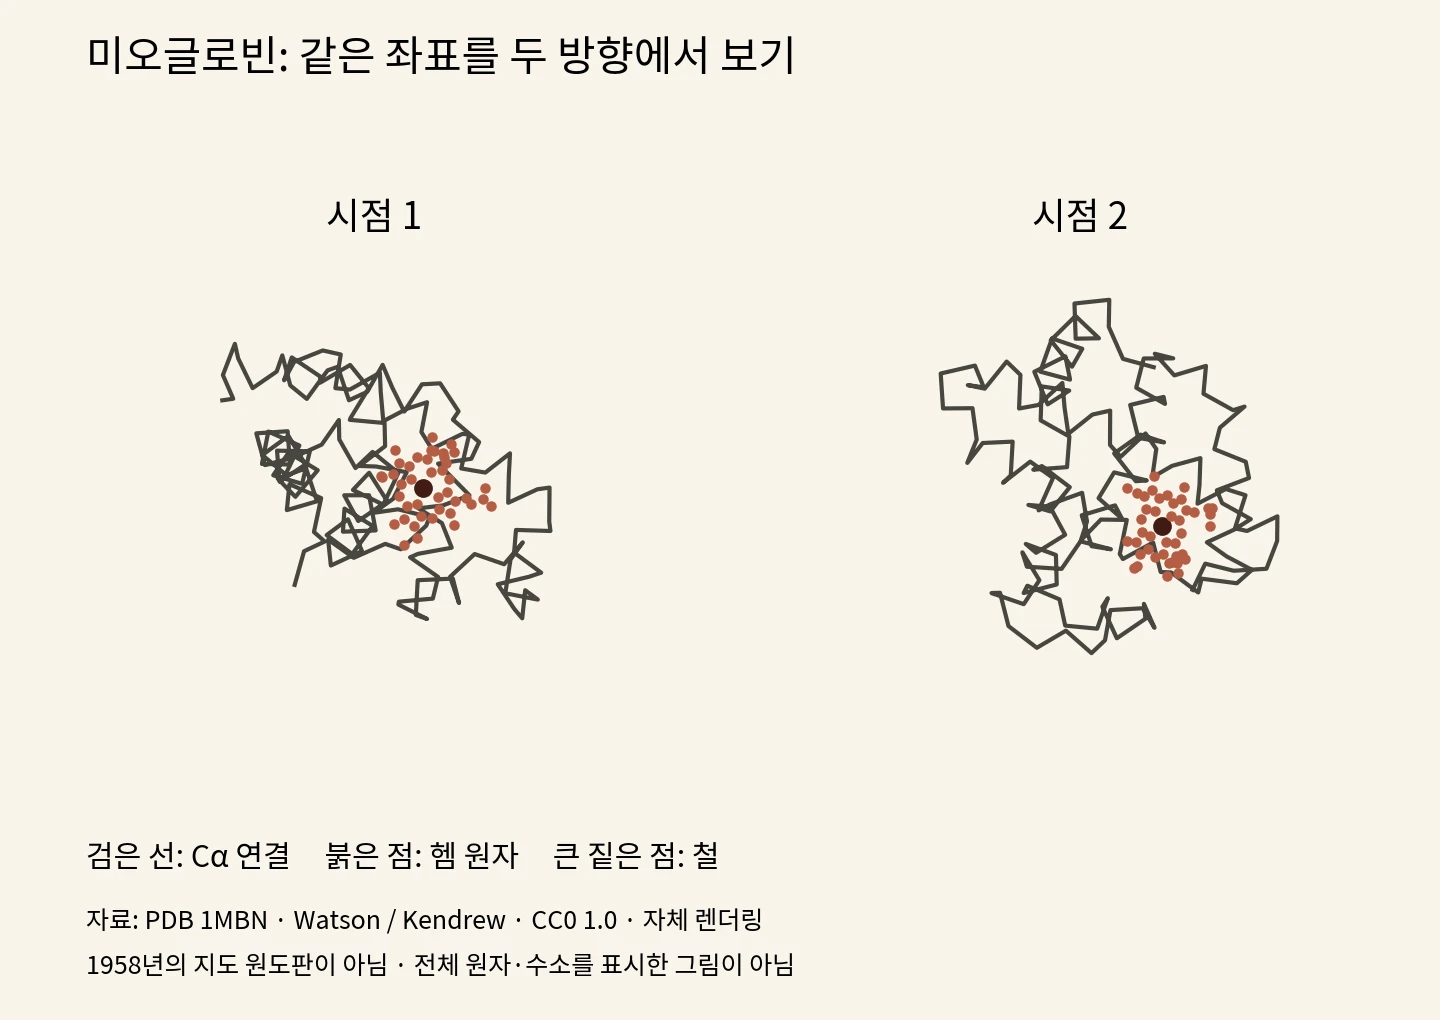
그림 2. PDB 1MBN의 공개 좌표로 직접 그린 두 시점. 선은 연속한 Cα 원자의 연결, 붉은 점은 헴 원자, 큰 짙은 점은 철이다. 수소나 모든 단백질 원자를 표시한 모형은 아니다. 1MBN은 1976년에 공개된 보관 자료로, 1958년의 6Å 지도 자체와 구별해야 한다. Watson·Kendrew 기탁 자료, PDB 데이터 CC0 1.0. 원자료에 잔기 8 Cα의 입체화학 주의가 기록되어 있어 원자 수준의 결합각 판독용으로 사용하지 않았다.67
오늘 공개 데이터베이스에서 미오글로빈 구조를 내려받아 그림을 만들 수 있다. 그러나 쉽게 접근할 수 있는 파일을 최초 발표의 원자료라고 부르면 역사적 시간이 섞인다. 위 그림에 쓴 1MBN은 X선 회절법으로 얻은 2.00Å 구조로 표기되어 있고, 데이터베이스 최초 공개일은 1976년 5월 19일이다. 파일이 보여 주는 분자와 그 파일의 공개·개정 이력을 함께 남기는 것이 재현 가능한 그림의 출발점이다.6
그림은 같은 좌표를 두 방향에서 본 것이다. 한 방향에서 가려진 부분이 다른 방향에서 보인다는 점을 확인할 수 있다. 반면 실험의 분해능을 마음대로 높인 것은 아니다. 회전하고 확대하는 화면의 자유와 원자료가 허용하는 정보의 수준은 별개다. 디지털 그림을 아무리 크게 확대해도 없던 실험정보가 생겨나지는 않는다.
PDB는 구조 좌표를 공개 데이터로 제공한다. 연구자가 얻은 결과가 다른 연구자의 계산 입력이 될 수 있다는 뜻이다. 측정한 실험실을 떠난 모형은 비교와 검토, 다른 분자의 해석에 쓰인다. 구조생물학의 성취가 축적되는 데에는 한 번의 발견뿐 아니라 그 결과를 다시 사용할 수 있게 만드는 형식과 보관 체계가 필요하다.7
본다는 일의 범위가 넓어졌다
미오글로빈은 단백질의 구조가 알아낼 수 있는 대상임을 보여 주었다. 그것은 생명의 복잡함을 말로만 인정하거나, 화학적 성질을 묶어 추정하던 자리에서 더 구체적인 질문을 할 수 있게 만든 변화였다. 어느 부분이 공간에서 가까운지, 기능을 담당하는 분자가 어디에 놓이는지, 다른 단백질과 어떤 배치가 닮았는지를 물을 수 있게 되었다.
이 성취를 충분히 인정한 뒤에야 다음 질문도 정확해진다. 한 조건의 결정에서 얻은 구조를 안다는 것은 움직이는 세포 안의 모든 반응을 안다는 뜻일까. 다른 분자가 결합하면 무엇이 변하며, 약물이 결합할 수 있다는 사실은 치료효과와 어떻게 이어질까. 구조의 한계를 말하려면 먼저 구조가 실제로 무엇을 밝혔는지 알아야 한다.
켄드루가 바꾼 것은 보이지 않는 것을 무조건 보인다고 선언하는 방식이 아니었다. 측정할 수 있는 신호와 알고 싶은 배치 사이에 실험, 수학, 계산과 화학적 해석을 연결했다. 단백질의 구조를 본다는 말은 그 연결 전체를 통과했다는 뜻이 되었다. 다음 신약의 역사는 이렇게 얻은 배치의 지식이 치료를 설계하는 도구로 바뀌는 자리에서 시작한다.
자료와 근거
참고 문헌 7편
참고 문헌
-
journal
A Three-Dimensional Model of the Myoglobin Molecule Obtained by X-Ray Analysis
Kendrew JC, Bodo G, Dintzis HM, Parrish RG, Wyckoff H, Phillips DC. Nature. 1958;181:662–666. doi:10.1038/181662a0. 대학 공개 소장 PDF의 원문 확인, 특히 동형치환·삼차원 분석·분해능 선택 대목.
-
journal
Structure of Myoglobin: A Three-Dimensional Fourier Synthesis at 2 Å. Resolution
Kendrew JC et al. Nature. 1960;185:422–427. doi:10.1038/185422a0. 제목·발표일·서지 확인; 전문 미확인. 세부 해석은 1962년 저자 강연으로 대조.
-
primary-lecture
Myoglobin and the Structure of Proteins
Kendrew JC. Nobel Lecture, December 11, 1962. pp. 676–698, 특히 재료 선택·분석 전략·계산기·6Å 및 2Å 구조 설명. Nobel Foundation 공개 PDF.
-
journal
Introduction to phasing
Taylor GL. Acta Crystallogr D Biol Crystallogr. 2010;66:325–338. doi:10.1107/S0907444910006694. 강도·진폭·위상과 전자밀도의 관계에 관한 공개 본문.
-
institutional-history
1962: John Kendrew & Max Perutz
MRC Laboratory of Molecular Biology. 연구소 역사 자료의 미오글로빈·헤모글로빈 연구 관계와 단백질 결정학 설명.
-
structure-data
1MBN: The stereochemistry of the protein myoglobin
Watson HC, Kendrew JC. PDB 1MBN. doi:10.2210/pdb1MBN/pdb. X-ray diffraction, 2.00Å; released 1976-05-19. 좌표 파일 2026-11-12 확보. 잔기 8 Cα 입체화학 CAVEAT 확인. Cα 연결·헴/철 좌표만 두 시점으로 자체 렌더링.
-
data-policy
RCSB PDB Usage Policies
RCSB PDB / wwPDB. PDB archive data files: CC0 1.0 Universal Public Domain Dedication. 원자료 저자 귀속 권장. 좌표 재사용 및 자체 그림 제작의 이용 근거.
진료에 관한 안내
진료 문의는 백록담한의원에서 안내합니다
고금의고는 의론을 발행하고 보존하는 곳으로, 이곳에서는 진료 문의를 받지 않습니다. 단백질 구조와 의학 연구와 관련해 진료 문의가 필요한 경우에는 백록담한의원에서 안내합니다.